|
|
|
|
|
|
|
第四章:發病及免疫學
簡介
在週期性的流行病(epidemics)和全世界的大流行病(pandemics)的爆發中,
流行性感冒病毒獨特的能力已眾所周知地在全部年齡組別中, 惡名昭彰地引起急性發熱呼吸的(acute
febrile respiratory)疾病。流行性感冒的兩個特性說明了許多病毒在流行病學(epidemiological)上的蔓延。首先是有能力在鳥類或豬的儲藏所內出現和傳播。這能力是由基因重組(genetic
reassortment)或直接傳播及後在不規則的間隔中傳播到人類。其次是當病毒已在人類確立後後,
那迅速和不可預料及重要免疫目標的抗原(antigenic)轉變。
一個能引起大量發病率(morbidity), 較大的患者死亡率及高接觸傳染性的病毒是一個原型的焦慮(archetypal
anxiety)。流行性感冒有潛力去產生這樣的一個局面。最早自十六世紀, 身為引起人類疾病起因的流行性感冒病毒已經傳播在人類族群當中(Cox
& Kawaoka 1998), 導致每一至三年的週期流行性發熱呼吸的疾病。此外, 因為一個新病毒在一個沒有免疫力的總族群中出現,
所以每一個世紀都經歷到一些全國流行及能迅速地捲至全世界的疾病。全國流行疾病的特徵包括通常在季節之外出現,
極度迅速的傳染並在地球的不同地方同時爆發, 和在所有年齡組中都有高攻擊率, 甚至連健康年輕成人都有高死亡率。考慮到世界人口,
國際旅行和旅遊業的增長後,全國性流行性感冒逼近的爆發甚至得到一個更迅速傳播的潛力。為了更全面地瞭解這個全球流行性威脅的背景,
這個章節將會描述疾病的發病(pathogenesis)原理和病毒與免疫系統之間的競賽。
發病
流行性感冒病毒的致病性(pathogenicity)和毒性是由幾個互相影響的因素所決定:
甲) 宿主因素:
- 目標感受器在宿主細胞上的存在
- 酵素在宿主細胞裡的可用性是在病毒的進入和複製中不可缺的
- 個別宿主免疫力(immunocompetence)的狀態
- 特異性免疫(Specific immunity)在個別宿主及目標族群內對付某病毒抗體辨識的區域(epitopes)
- 免疫系統由發炎使有效地控制病毒複製而沒有對宿主造成嚴重附帶損傷的能力
乙) 病毒因素:
- 對宿主細胞的結合能力
- 病毒散播的能力 (virus shedding)
- 細胞病理變化(cytopathogenic effects)的限制容許病毒複製和由宿主控制之間,
有一個合適的平衡
- 免疫反應的有選擇性壓力驅動抗原變異的演變, 使能由免疫監控系統(immunosurveillance)中逃脫
- 從人畜共生傳染病(zoonotic disease)而來不同的病毒品種(strains)與結合,
使由免疫監控系統中逃脫
- 免疫反應的調整減弱(attenuate)有效的宿主防禦機制
病毒的侵入: 病毒怎麼進入宿主?
流行性感冒被傳送的主要方式是透過浮質(aerosols) 和小滴(droplets),
從人傳到人。流行性感冒然後通過呼吸道進入宿主。一個人的肺部有大約三億個終端泡囊(terminal
sacs), 叫做肺泡(alveoli),在被吸的空氣和血液之間的氣體交換中起其作用。人肺部的總吸收性區域範圍從80到120
m2。人的靜息換氣率(resting ventilation rate)是大約每分鐘6
公升空氣, 引入大量外來微粒和空氣中的飛沫包含可潛在的病毒到肺部。微粒的沈澱取決於它們的大小:
非常小的顆粒的吸入不導致通過小窩或支氣管系統的吸收。直徑大約1 到4 μm的小小滴會沉澱在小氣道。較大的微粒不能進入呼吸系統或被沈澱在上呼吸道(圖1A)
。
眾多的宿主防禦機制包括機械障礙阻攔呼吸道受到傳染。呼吸道被用黏膜纖毛的層包括纖毛細胞(ciliated
cells), 黏液分泌細胞(mucus-secreting cells)和腺(glands)所覆蓋(圖1
B) 。外來微粒在鼻洞或上呼吸道被黏液(mucus)所困, 運回到喉頭及吞下。外來微粒從較低的呼吸道被上皮細胞(epithelial
cells)的纖毛行動提上。在缺乏纖毛或黏液的肺泡下, 由巨噬細胞(macrophages)負責毀壞微粒(圖1)
。
對宿主細胞的結合(Binding)
流行性感冒病毒的主要目標是呼吸道的柱狀上皮細胞。如果病毒感受器是存在和工作的,
這些上皮細胞也許是易受傳染的。因而, 病毒感受器是有決定性的性向(tropism)。但是,
這個簡化的模型經常是不足以解釋病毒屈性, 因為感受器在宿主的分佈一般比已觀察的病毒向性分佈為廣。
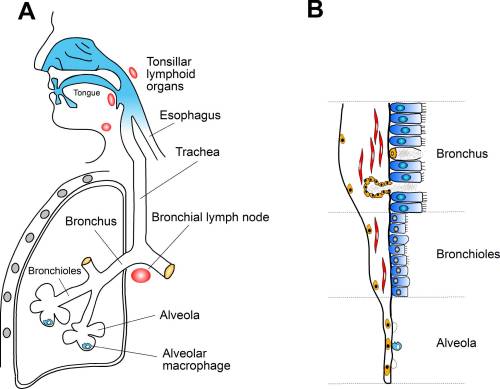
圖1 . 流行性感冒在呼吸道進入的地點。
(A) 顯示人類氣道的解剖和功能構造。流行性感冒首先傳染上氣道和在支氣管(bronchus)和細支氣管的(bronchioli)纖毛細胞。引起的臨床綜合症狀包括氣管炎(tracheitis)、支氣管炎(bronchitis)、細支氣管炎(bronchiolitis),
和支氣管肺炎 (bronchopneumonia)。能適應的免疫反應由淋巴結沿氣道開始。(B)
呼吸上皮由一層黏液(支氣管), 纖毛細胞(支氣管和細支氣管), 和肺泡的巨噬細胞(肺泡)上的特別裝備保衛接踵而來的病原生物。
在流行性感冒的傳染上, 病毒血球凝集素(hemagglutinin)(HA)
感受器連接位置必需連接到宿主細胞的表面連接在硅鋁(sialic acid)層上的酸半乳糖
(galactose)(Weis 1988) 。HA連接位置的某些區域在流行性感冒病毒亞型之間是高度被保守的(Daniels
1984)。宿主可能可以由幾個機制防止連接:
(1) 特異性免疫反應(specific immune response)和特異性IgA
抗體的分泌物, (2) 非特異性的機制(unspecific mechanisms),
譬如黏膜纖毛(mucociliary)的清除或黏蛋白(mucoproteins)的生產能連接到病毒血球凝集素,
及(3) 宿主感受器(硅鋁層酸)的基因多樣化, 高度被保存在同樣的種類, 但不同在鳥和人的感受器之間(Matrosovich
2000)。 結果, 鳥病毒需要在血球凝集素感受器連接的位置進行突變, 去通過鳥和人之間跨越宿主的障礙。在豬隻身上,
硅鋁層酸種類多形性(polymorphisms) 和對人並鳥的半乳糖在組織上的連合被共表達(co-expressed)。所以,
共傳染並鳥和人的流行性感冒可能發生在豬和能容許鳥並人種在共被傳染的(co-infected)細胞抗原特性的基因重組。最近,
有顯示某些鳥流行性感冒病毒在人和鳥上能連接到不同的目標細胞(Matrosovich 2004)
。這能解釋從90 年代的結尾以鳥流行性感冒從禽畜直接地傳染到人的幾個案件的觀察。H5N1
和一些其他亞型(subtypes)流行性感冒A 病毒能連接到在人眼上的感受器 (Olofson
2005) 。
和流行性感冒病毒的連接一樣重要的是從它在寄主細胞上連接位置的切割(Cleavage)。切割是病毒神經胺酸酶酵素(neuraminidase)的功能角色(Chen
1998)。流行性感冒病毒的毒性(virulence)取決於神經胺酸酶酵素與血球凝集素的兼容性。一個已經在血球凝集素進行突變(mutations)的劇毒病毒需要在神經胺酸酶酵素進行突變以保持其毒性(Baigent
& McCauley 2003, Hulse 2004)。 結果, 發現對神經胺酸酶酵素抗化劑(inhibitors)的有抗藥性的流行性感冒病毒的適應力和毒性是減少了的(Yen
2005)。
當細胞膜和病毒由病毒感受體已被接近地並列(juxtaposed),
複合體是被細胞膜內吞(endocytosed.)。H+ 離子進入後胞攝小胞(late endocytic
vesicles)作為一次生理學事件, 然後酸化(acidification)內部。在酸化中,
病毒HA 進行一個形態的重新整理以生產融合活躍蛋白(fusiogenic protein)。HA
的環狀區域(loop)成為捲成圈的卷最終帶來病毒和胞攝小胞膜的更加接近以便融合可以發生。允許病毒核糖核酸的釋放到細胞質內,
使在酸性胞攝小胞內的H+ 離子 由M2 離子渠道泵入病毒內部。結果, 在病毒和胞攝小胞膜
的融合之後, 因瓦解在M1 和核糖核蛋白質複合體(ribonuclein complex)之間對低酸鹼度敏感
的相互作用, 病毒核糖核酸從M1分開。病毒核糖核酸然後以腺三磷(ATP)依賴方式被輸入細胞核進行轉錄(transcription)和轉譯作用(translation)(Flint
2004)。
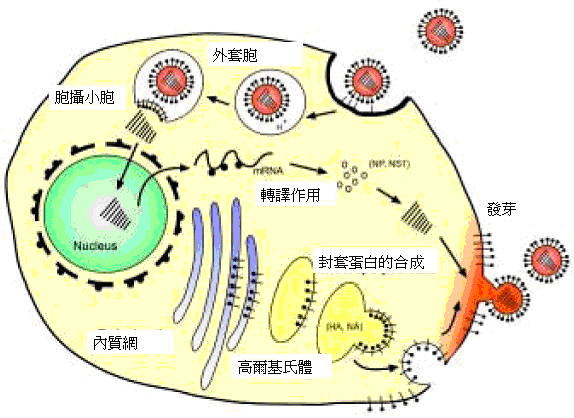
圖2: 流行性感冒A 病毒的複製週期。 病毒的連接和侵入,以胞攝小胞膜融合和病毒核糖核酸的釋放,
在細胞核內的複製, 結構和封套蛋白(envelope proteins)的合成, 病毒發芽和釋放能傳染鄰居的上皮細胞
(從Cox & Kawaoka 1997改良的)。
首要的複製在那裡發生?
細胞蛋白酵素(proteases)必需經常切割病毒蛋白質形成成熟而富傳染性的病毒微粒。因而,
另外可進入感受器的因素可決定病毒複製的位置。在人類方面, 流行性感冒病毒複製一般受限於呼吸道上和下部的上皮細胞。這是由於絲氨酸(serine)蛋白酵素,
胰蛋白克拉(tryptase Clara), 有限的表示, 由非纖毛支氣管上皮的克拉細胞所分泌。被淨化的酵素切割細胞外微粒中的多胜太鏈HA
鏈的前體HA0和活化病毒內的HA 令他們受感染。一些高度劇毒性鳥類流行性感冒的品種, 然而,
包含在HA 可被切割的位置的基因插入導致經普遍存在蛋白酵素(ubiquitous protease)處理。這也許導致已修改過的向性及,另外複製的位置在動物和人之內(Gamblin
2004 ) 。在人身上的鳥類流行性感冒組織屈性(H5N1)沒有一個合適的定義。在一個案件中,
病毒核糖核酸由一個反轉錄聚合脢鏈反應中, 被檢出存在於肺、腸和脾臟, 但陽性鏈(positive-stranded)
病毒核糖核酸, 表明病毒複製, 已完全限制於肺和腸內(Uiprasertkul 2005)
。因而, 在人內的H5N1病毒複製也許被限於呼吸道和小腸道不同於在其它哺乳動物和鳥類中已被證明的散播性(disseminated)傳染。
傳染病怎樣在宿主傳播?
一旦流行性感冒已高效率地傳染呼吸上皮細胞, 在幾小時之內,
複製便會產生許多病毒。傳染性的粒子從上皮細胞的細胞膜頂端優先地被釋放到肺氣道, 這個過程叫發芽(budding)。因鄰居細胞的迅速傳染,
這有利於病毒在肺內的快速傳播。 由自然發生的突變體在HA切割位置的改變, 這能顯著地影響流行性感冒的向性和致病性。結果,
它可以由其它細胞的蛋白酵素所識別。
這解釋到為什麼在香港許多被感染鳥類流行性感冒(H5N1)的人,
有食道(gastrointestinal)、肝和腎臟, 和呼吸的症狀和為什麼這些患者的病毒會對老鼠產生神經劇毒(neurovirulent)
(Park 2002). 這些症狀是否起因血原傳播(hematogenic spread)或反映病非肺(non-pulmonal)形式的病毒進入到宿主仍然是不明朗的。但是,在NA
裡的變化也可能, 有一部分, 解釋流行性感冒的發生在許多組織上的(pantropic)本質。例如,
取自實驗室流行性感冒的WSN/33品種, 第一個被分離的人類流行性感冒病毒的變體, 不同於多數人類流行性感冒品種,
能在試管內在沒有加以胰蛋白而複製。在這病毒, 一個碼內的刪除(in-frame deletion)去除在NA殘基46
(residue 46) 上的醣化(glycosylation)位置允許神經胺酸酶酵素連接和隔離胞漿素原(plasminogen)。這導致地方性普遍存在的蛋白酵素前體變成高濃度,令HA的切割增加。這些研究結果提出一個為什麼流行性感冒A
病毒或許其它病毒在人類能變得高度致病性的方式。(Goto & Kawaoka 1998)
。有趣的是, 基因重建的1918年全國流行的西班牙流行性感冒病毒(H1N1) 的研究 顯露了NA
傳達的HA可切性的另外機制可能與那病毒複製和其毒性相關 (Tumpey 2005) 。
終於, 動物研究顯示, 接種的部位(site of inoculation)可決定流行性感冒病毒的在宿主的傳播路線。例如,
嗜中性白血球性 (neutrotropic) NWS品種經腹膜內通過血原 (hematogenous)傳播散播到腦部,
但當病毒被接種在鼻子內, 它們能通過知覺神經元(sensory neurons) 到達中央神經系統(central
nervous system) (Flint 2004). 後者, 在香港H5N1 病毒中已被証實(Park
2002)。
宿主最初的反應是什麼?
雖然一種時常發生的疾病, 專一性炎症性模式(specific
inflammatory patterns) 或免疫反應調節及在人類流行性感冒中,細胞病變的發病原理是並未完全被瞭解。
鳥流行性感冒是一種散播性疾病的報告,多是來自動物研究的證據。然而,這樣的病理生理學模型也許在人身上全然不同。
細胞激素(cytokines) 和熱病
一個主要問題是基本上在呼吸道一種地方化的傳染是怎樣可導致這樣嚴重體質上的症狀(constitutional
symptoms)。 在許多其它傳染病中, 非專一性及有適應力的免疫反應對流行性感冒的臨床症候(signs)和症狀及傳染後的控制具相當大的貢獻。這些免疫機制可導致地方性並系統性的作用。特別是在免疫系統之內,
在傳染以後, 由呼吸黏膜上皮和免疫細胞迅速地被產生的細胞激素, 是激活細胞地方性的激素,。趨化激素(chemokines)是作為為免疫系統細胞的驅化物質(chemoattractants)是細胞激素的一個子集(subset).
例如, 流行性感冒傳染在人的類漿細胞型(plasmacytoid)和骨髓樹狀細胞(myeloid
dendritic cells) 誘導一個趨化激素分泌物程序容許不同的免疫受動器(effector)被協調地吸引(Piqueras
2005, Schmitz 2005)。 最重要的細胞激素為內因性致熱物(endogenous
pyrogens)和被介入在熱病的發病原理之中: IL-1Α/Β,
TNF Α/Β, IL-6,干擾素(interferon)(IFN)
Α/γ, IL-8, 和巨噬細胞炎性蛋白(macrophage
inflammatory protein)(MIP)-1Α。
這些細胞激素佔一大部份在經實驗性或自然性以感染流行性感冒的人類的鼻咽洗滌中被查出
(Brydon 2005) 。有提議指這些局部性或系統性被生產的細胞激素, 接著外因性致熱物(exogenous
pyrogens) (如流行性感冒) 與吞噬細胞的相互作用, 到達中央神經系統。在下丘腦,
有一小範圍, 稱血管脈叢終端器官(Organum vasculosum laminae
terminalis), 其內有一個被減少的血腦 障壁(Blood-Brain-Barrier)和允許致熱物通過。在這個位置,
以依賴劑量(dose-dependent)方式, 他們誘導前列腺素(prostaglandins)
, 特別是前列腺素E2 的生產。這些傳遞者(mediators)增加恆溫凝固點(thermostatic
set point)和觸發複雜體溫調節機制(thermoregulatory mechanisms)增量體溫。實際上,在以上被提及的細胞激素與流行性感冒傳染的嚴重性並沒有被關聯,
爭論傾向於它們的基因多效性(pleiotropy)和在信號行徑之中的互相干擾。細胞激素的相關性也許在流行性感冒品種或個體之間都有不同的地方。流行性感冒傳染以香港1997年的H5N1
品種被提議有效地誘導自NS基因產物的前發炎(pro-inflammatory)細胞激素(特別是TNFΑ)
(Cheung 2002, Lipatov 2005, Chan 2005). 研究目的是在於辨認其他誘導細胞激素釋放的病毒組件顯示:不論從被傳染的老鼠的肺,
或是從流行性感冒病毒合成中取得的雙鏈(double-stranded) (ds) 核糖核酸當注射入老鼠CNS
心室時, 是發熱性的。當它們死後, 這樣的dsRNA 從被傳染的細胞被釋放繼而刺激細胞激素生產。最近研究顯示,
雙鏈感應把關受體(dsRNA-sensing Toll-like receptor) (TLR)
3被表達在肺上皮細胞 並TLR3 直接參與對呼吸上皮細胞的免疫反應 (Guillot 2005,
Akira & Takeda 2004)。有趣的是,一個人類與生俱來對抗流行性感冒免疫反應的開始,
相比由TLR 3查出dsDNA, 取決性不亞於通過TLR 8的辨別單鏈核糖核酸(single
stranded RNA)。病毒微粒可能都是致熱性的, 因被除去核糖核酸但包括病毒油脂,
血球凝集素, 和神經胺酸?酵素的微毒粒 (virosomes) 也許導致發燒。然而,個別病毒組件是非
致熱性的, 大概能解釋為什麼完整病毒疫苗能產生像流行性感冒的症狀但次單元(subunit)疫苗則不能(Brydon
2005) 。
呼吸症狀
支氣管系統過度反應(Hyperreactivity)(Utell
1980, Little 1978),阻礙主要小氣道(Hall 1976)及減弱的擴散容量(Horner
1973)是在流行性感冒傳染普通的。過度反應和支氣管阻礙也許維持一段長時間, 特別是在過敏疾病(Kondo
& Abe 1991), 和也許是前炎性細胞激素概況(pro-inflammatory
cytokine profile)以干涉導致耐受浮質性致敏原(aerosolized allergens)的能力
(Tsitoura 2000) 。
在人類流行性感冒傳染, 嚴重肺泡炎症為主要病毒肺炎, 是罕見的。它通常提出下和上部呼吸道的延長的發炎與纖毛細胞損失、用hyperemic
或出血性區域在透明膜(hyaline membranes) 、 嗜中性和單核細胞的滲入(Yeldandi
& Colby 1994) 。 與主要病毒肺炎對比, 細菌重複傳染(bacterial
superinfection) 是在人類流行性感冒中常見的和它能引致嚴重發病率和死亡率
特別是在年長的成人。被辨認的幾個因素, 能解釋呼吸道細菌傳染風險的增加, 這包括柱狀上皮細胞損傷與上皮細胞障礙的破壞(Mori
1995), 減少黏膜纖毛的清除(Levandovsi 1985), 改進細菌的黏附(McCullers
2002), 和中性白血球(neutrophils)的功能改變(Abramson 1986,
Cassidy 1988)。
細胞病態
人類流行性感冒導致複雜細胞病態, 主要在呼吸道柱狀上皮細胞,
導致急性肺和氣道疾病。流行性感冒病毒在呼吸道的傳染和的病毒複製導致細胞損傷被誘導寄主細胞蛋白質綜合的下降調節(downregulation)
(Katze 1986, Sanz-Esquerro 1995) 並細胞計畫性死亡(apoptosis)
(Wiley 2001a)。後者, 又名細胞程式性死亡, 是一系列的被定義的細胞事件最終導致高效率地撤除細胞和它的內物。細胞計畫性死亡可能由不同的機制觸發和以形態上的改變察覺,
包括細胞骨架(cytoskeleton)的破壞, 細胞質和核染質(chromatin)的凝聚、線粒體作用失效、DNA斷碎,
和最後, 小細胞膜接連粒子名為 凋亡小體(apoptotic bodies) 的形成,
後被吞噬細胞譬如巨噬細胞和樹狀細胞(dendritic cells)清除。
流行性感冒病毒引發的細胞計畫性死亡是由Fas傳達機制和Fas獨立信號傳達的,
譬如FADD/caspase-8 複合體由蛋白激脢 R (Protein Kinase
R) (PKR)所形成 , 開始一條硫胱氨酸蛋白脢(caspase) 串流(cascade)。
由IFN誘導及被dsDNA激化的PKR是在許多凋亡途徑(apoptotic
pathways) 中的一個關鍵控制組件 (Brydon 2005)。作為往細胞計畫性死亡的第三條路,
流行性感冒通過病毒神經胺酸酶酵素(neuraminidase)激化變型生長因子貝他(TGF)-Β。NA可能由促進TGF-Β切割至它的活躍形式激活潛在在細胞表面的TGF-Β。TGF-Β
起始一個信息串流(cascade).小瀑布導致 c-Jun N 端蛋白質激酶(c-Jun
N-terminal kinase) (JNK) 或壓迫活化型蛋白質激酶(stress
activated protein kinase), 造成轉錄因素的活化和前凋亡基因表達(pro-apoptotic
gene expression) 的上游迴饋(upregulation)。這條途徑, 與小蛋白的線粒體膜反應,
被譯成在PB1 蛋白質的一個選擇+1閱讀框架 (+1 reading frame) (Chen
2001), 已被蘊含在淋巴細胞計畫性死亡及能解釋在急性傳染期間的淋巴球減少症(lymphopenia)。
肺組織受傷後而來的流行性感冒病毒的傳染已與細胞氧化壓力(oxidative
stress), 活性氧(reactive oxygen species) (ROS)的生產
和硝酸氧化物合成酵素2 (nitric oxide synthetase-2) 有關,
導致易反應有毒性氮氣中間體(intermediates)的形成。然而, 抗氧劑, 在試管內的支氣管(bronchiolar)細胞線中的細胞計畫性死亡只是有很少的作用。
H5N1的傳染症狀
鳥類流行性感冒是鳥的傳染病由A型品種流行性感冒病毒所造成。迄今,
所有高度致病性爆發的形式是由流行性感冒亞型H5和H7 A病毒所造成。當前鳥類流行性感冒在人類(H5N1)
是否和以上提到的細胞病態一樣是未知數。只有很少宗嚴重或致命的案件被研究。但是, 無症狀或溫和症狀性的(symptomatic)疾病是可能的(Buxton
Bridges 2000, Katz 1999) 並其發生率也許被低估。
H5N1 流行性感冒在人類最共同的初期症狀是高燒、和在那些住醫院的患者有肺炎、咽炎(pharyngitis)、小腸症狀、結膜炎(conjunctivitis),
和急性腦炎(encephalitis)(Yuen 1998, Tran 2004, Yuen
& Wong 2005).。初期的徵兆是肺炎的成年病人經常進一步了發展成像ARDS的疾病。在H5N1
流行性感冒的致命病例, 易反應的噬血症候群(Hemophagocytic Syndrome)被描述為一個突出的特點。
在肺病以組織擴散肺胞損傷和細胞間的纖維變性之外, 肺外部 位(extrapulmonary)的介入已被描述為廣泛性肝中央小葉片壞死(extensive
hepatic central lobular necrosis), 急性腎小管壞死 (renal
tubular necrosis)並淋巴缺乏(lymphoid depletion) (To
2001), 雖然在分離後沒有病毒被發現,反轉錄聚合鏈反應(Reverse Transcription-Polymerase
Chain Reaction和免疫染色(immunostaining)測試發現可溶解的介白質子-2
感受器(interleukin-2 receptor)、白質子-6 ( interleukin-6)和干擾素伽瑪(interferon-gamma)有增加了。另外,
腫瘤壞死因素阿爾法(tumor necrosis factor-alpha) mRNA
在其它以人類H5N1 流行性感冒的肺組織的病例中被發現(Uiprasertkul 2005)
。
與人類H1N1 病毒比較(Hayden 1998), 從1997
年的香港H5N1品種已被提議其有效力地由NS基因產物誘導前炎性細胞激素包括IL-10、IFNΒ、RANTES、IL-6
和特別是TNF (Cheung 2002, Lipatov 2005, Chan 2005)。這些研究的作者假設,
在致命性人類傳染性鳥類亞型H5N1中, 最初的在呼吸道的病毒複製觸發由一個易反應的噬血症候群所複雜化的細胞素風暴(hypercytokinemia)
也許是有別於通常人的子型以外的流行性感冒A H5N1傳染的發病原理 (To 2001)。在H5N1
鳥類流行性感冒的致命病例中並未發現細菌重複傳染(To 2001)。這觀察也許是這些最嚴重的早期致命病例結果的偏見,
假設地沒有容許重複傳染的發展。
流行性感冒怎樣被傳播到其他人中?
呼吸性傳播取決於帶病毒氣載微粒和浮質的生產。在講話和正常呼吸期間,
浮質會生產。從鼻腔流出要求打噴嚏和如果傳染製造了一種鼻分泌物, 那便可更有效地流出。噴嚏生產20,000
小滴與只有咳嗽比較幾百小滴噴出。最大的小滴下跌到幾米之內的地面。剩餘小滴移動的距離取決在它們的大小。直徑1-4μm的小滴也許長期保持停留及到達下呼吸道。實驗性流行性感冒傳染的志願者顯示,
小小滴在支氣管的吸入比較大小滴的入上呼吸道或眼球結膜的接種為多。 (Alford 1966,
Little 1979, Bridges 2003). 如果病毒在早期傳染中於下呼吸道複製,
這會導致更小且載有更多病毒及更高傳染力的小滴出現, 因為特異性免疫監控系統仍然未建立。H5N1從動物到人的傳染也許以不同的方式直接(和間接)接觸被傳染的禽畜。
高攻擊率是導致流行性感冒A 流行性爆發所必需的。所以, 冬天流行病在歐洲和北美洲也許因為更加多近距離的接觸和逗留在欠通風的房間。流行性感冒病毒的適應力是強的:不知何故它生存的能力在較低的相對濕度和更低的環境溫度為佳(Hemmes
1960) 。鳥類流行性感冒(H5N1) 也許不太適應小滴傳染: 潛伏期是較長的(Chotpitayasunondh
2005), 理論上在流行性期間較造成較少的許多人的一併開始染病。小腸複製和症狀在呼吸顯示至一個星期(Apisarnthanarak
2004 以前), 允許特異性免疫反應在傳染性小滴傳播之前起始演變。結果,在鳥類流行性感冒的鼻咽複製較少在人類流行性感冒發生(Peiris
2004) 但病毒複製是被延長(Beigel 2005) 。直到現在, H5N1在人之間傳染是罕見的(Buxton
Bridges 2000, Ungchusak 2005)和相當無效的。總而言之, 鳥類流行性感冒病毒(H5N1)
據推測人傳人的傳染和最後達到是否足夠有效引起流行性或大流行的感染率要幾個傳代(passages)。
免疫學
流行性感冒導致宿主急性感傳染和起始免疫反應串流(cascade)
激活幾乎免疫防禦系統的所有部份。大多數最初的先天性反應, 包括細胞激素釋放(IFNΑ/Β),
彙集嗜中性粒細胞(neutrophil Granulocytes) 或自然殺手細胞(natural
killer cells) (Mandelboim 2001, Achdount 2003),
和細胞活化作用, 負責起始急性臨床症狀(參見上面) 。先天性免疫是後天性免疫反應(adaptive
immune response)必要的, 首先, 限制最初的病毒複製和抗原裝載, 及第二,
因為後天性免疫反應的抗原專一性淋巴細胞是被在它們與病毒的互作用期間, 被先天性免疫系統細胞誘導的協同刺激分子(co-stimulatory
molecules)所激活 (圖3)。流行性感冒病毒, 然而, 譯碼在非結構性蛋白質1(NS1)
機制中躲避和對抗IFNΑ/Β 反應。NS1可能可以隔離病毒dsRNA防止由細胞感應器識別這危險分子否則會觸發IFN
Α/Β 釋放(Garcia-Sastre 1998, Garcia-Sastre
2005).獲得性免疫反應(adaptive immune response)需要數日才有效但之後幫助包含病毒傳播,
要消滅病毒, 和最後建立記憶反應以確保可長期性抵抗同源病毒的再感染。在流行性感冒亞型的交差保護很少被察覺到並且傳染根本無法誘致橫跨亞型或A及B型之間的保護(Treanor
2005). 流行性感冒感染導致系統及地方性抗體 (體液免疫) (humoral immunity),
並毒殺性T細胞(cytotoxic T cell)反應 (細胞性免疫) (cellular
immunity), 每個都對從急性傳染的復元和再感染的抵抗之為重要。
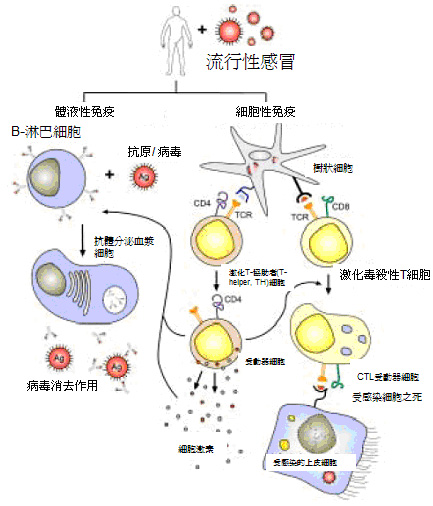
圖3 . 對流行性感冒病毒傳染的體液和細胞性免疫反應。體液性免疫系統的分支包括B
淋巴細胞(左), 在與流行性感冒互作用以後, 分化成分泌抗體的血漿細胞。細胞性反應(右)
以抗原呈現通過MHC I (黑色) 並且II (藍色) 分子由樹狀細胞開始, 然後引致活化作用、抗原具體T
細胞的激增和分化(CD4 或CD8) 。這些細胞獲取動作器細胞作用直接地幫助, 釋放細胞激素,
或傳達細胞毒性(cytotoxicity)後識別抗原 (Adapted from Flint
2004)。沒有在此被顯示的是由流行性感冒誘導的細胞記憶免疫反應和不同形式的先天性免疫力。
體液性免疫
抗體(如IgG, IgA)是由B 細胞發展最後階段的血漿細胞生產,
需要B 細胞已識別抗原及已被CD4 T 細胞和T 細胞衍生的細胞激素(圖3)刺激。與T
細胞不同, B細胞可以其原有形式識別抗原。抗原特異性從基因的隨意重整編碼在細胞內的免疫球蛋白高可變異(hypervariable)區域出現,
儘管細胞仍然在骨髓。然後, 未活化(Native) B 細胞進入循環, 通過血液和淋巴腺(lymphatics)至組織和淋巴腺器官。在淋巴結(lymph
nodes), 未活化(native) B 細胞由它們的表面抗體識別同源抗原, 變成為激活,從IgM
轉換(switch) 至IgG 生產(類型轉換) (class-switch), 增加它們的免疫球蛋白特異性和親合力(affinity),
及當細胞繼續在細胞激素的影響下分裂, 分化成血漿細胞或記憶B 細胞。當IgA 被運輸橫跨上氣道的黏膜上皮細胞,
其用以中和及清除病毒傳染, IgG 主要負責保護下呼吸道。 (Palladino 1995,
Renegar 2004)。
流行性感冒傳染導致對流行性感冒糖蛋白HA, NA, M 和NP
蛋白質的抗體系統性生產。例如, HA 專一性免疫球蛋白, 包括IgM 、IgA 和IgG,
出現在病毒接種之兩星期內。抗NA發展與血球凝集素抗化性抗體(hemagglutinin-inhibiting
antibodies)的發展平行。在傳染以後的4-7 個星期之間, 在抗體滴定量便達到峰頂,
隨著平穩的下降。在傳染以後, 抗體可保留幾年, 儘管沒有重復暴露(re-exposure)。抗HA抗體與保護免受同源病毒的傳染及引發疾病,
並且誘導中和抗體的是疫苗免役接種當中的一個主要目標。血清HA 抗化滴定量1:40 或更大,
或血清中和滴定量1:8 或更大, 應可保護免受傳染。在較老的人體中則需要更高水平的抗體,
才可完全保護 (Treanor 2005) 。
與抗HA抗體對比, 抗NA抗體不能中和病毒感染, 但是反而減少病毒從被傳染的細胞高效率的釋放
(Johansson 1989) 。這是因為神經胺酸酶酵素劈開附有最近形成的微粒的細胞感受器中硅鋁層酸的殘基。抗NA
抗體可以保護免受疾病及結果減少病毒散播的能力和嚴重的症狀。有人提議也有相似的作用對流行性感冒A
的M2 蛋白質的抗體, 雖然總括來說, 抗體對內部抗原是非中和性的, 它會更快的消失和看來不能充當防護免疫的一個角色。
黏膜免疫反應對流行性感冒, 依照在鼻內可測量得的分泌物, 以對HA
的IgA 和IgG1為特徵。黏膜抗HA IgG 水平與其血清水平有密切關聯, 表明從系統隔間的被動擴散,
但IgA 是局部地被生產。研究建議,對再感染的抵抗是主要地由局部性被生產的HA 專一性IgA所傳達,雖然也許是和IgG相關的(Renegar
2004)。如果有充夠的濃度, 黏膜或單獨系統性抗體可以是防護性的, 但最理想保護發生於血清和鼻抗體並存時
(Treanor 2005)。抗體在免疫中對流行性感冒的行動是由中和病毒, 或瓦解被傳染的細胞病毒通過補體或抗體依賴型細胞毒性作用
(antibody-dependent cellular toxicity)。
在急性病毒傳染病毒中消滅病毒的主人是對來自同樣病毒的傳染有普遍的免疫力。然而,
儘管有活躍的免疫清除, 由流行性感冒病毒造成的急性傳染一再發生。這是因為流行性感冒顯示一可塑性的結構及其能容忍在它的結構蛋白質裡有許多氨基酸替代而沒有失去它的傳染力。例如,連接分子HA的硅鋁層酸感受器,
負責病毒對目標細胞的進入, 並且是一個為中和抗體和細胞毒素的T 淋巴細胞主要目標, 展示連續免疫壓力。這免疫選擇或多樣化,從複製的錯誤出現,
導致輕微HA隨時間的變異而允許病毒逃避人類免疫反應 (抗原漂移)(Antigenic drift)。這些變動是流行性感冒每年有流行性傳播的原因和在每年流行性之前需要公式化新疫苗。相反,
在基因組或基因組段的再結合或重組以後, 因為基因完全地譯碼成新表面蛋白質, 抗原漂移是在病毒表面蛋白質上的一個主要變化。每當染色體複製時,
抗原轉換是可能的。相反, 抗原漂移只能在某些情況之下發生, 是相對地罕見和可能是大流行的一個原因。
細胞免疫反應
樹狀細胞被顯示在開始和駕駛T 淋巴細胞反應中扮演一個主要主角。它們是稀疏地分佈的骨髓衍生的白血球遷移小組專門為抗原對T
細胞的攝取, 運輸, 處理和展示 (圖3) 。基本的範例是, 存在於肺內的樹狀細胞從侵入的病原生物取得抗原,
變為激活, 並隨後往局部性引流淋巴結(Legge & Braciale 2003) 。抗原樣本已處理和被固定在樹狀細胞表面作為由主要組織相容性複雜體(major
histocompatibility complex )(MHC)分子的縮氨酸(Silver
1992). 在淋巴結, 現在成熟樹狀細胞高效率地由任何一個T 細胞與在樹狀細胞表面的特異性外來-縮氨酸-MHC
複合體感受器觸發一個免疫反應(Shortman & Liu 2002)。從樹狀細胞的病毒傳染的內因性抗原被處理及被展示通過MHC
I 分子至CD8 T 細胞。外因性抗原通過MHC II 分子對CD4 T 淋巴細胞被展示。二者擇一地,
樹狀細胞也許可展示它們從被傳染的細胞獲取的抗原, 或轉移抗原至在淋巴結內鄰近的樹狀細胞,
然後由一個程序叫交叉抗原提呈(cross-presentation)起始CD8 T細胞反應
(Belz 2004, Heath 2004, Wilson 2006).最近被激活的T
細胞獲取受動器細胞作用和移居至在肺內的傳染地點以便傳達它們的抗病毒活動(圖3) 。
在感染復元以後, 免疫學記憶狀態接著而來在個體 更能控制隨後同樣病原的傳染
(Ahmed & Gray 1996)。記憶是由抗原特異性T 細胞以持續增加的頻率所維持
, 與未活化 (na?ve) T 細胞比較, 減少了共刺激(co-stimulatory)信號的需要,
和對抗原再刺激(restimulation)的有迅速的反應 (Woodland & Scott
2005). 亦有證據傾向於流行性感冒特異性CD8 記憶T 細胞在人類肺裡的累積的地點有特異性,
為對肺再感染作緊接的免疫性保護(de Bree 2005, Wiley 2001b)。在流行性感冒傳染期間,
CD4 和CD8 記憶T細胞亞群(subset)反應, 和傳達控制流行性感冒病毒的再感染,
是與初次感染病毒的清除主要依靠CD8 T 淋巴細胞的作用不同(Woodland 2003)。
另一重要特徵, 例如在流行性感冒傳染, 是CD4 T 淋巴細胞輔助B
淋巴細胞產生抗HA和抗NA 抗體(圖3) 。在HA由CD4 T 輔助細胞識別的病毒抗體辨識的區域有別於由被那些抗體識別的區域。T
輔助(Th) 細胞也許亦促進病毒特異性CD8 細胞毒性T 淋巴細胞的產生。Th 細胞至少可根據類型它們生產的細胞激素,
進一步被細分為Th1和Th2 細胞,。在老鼠, 流行性感冒傳染導致一個強烈的Th1 反應,
但Th2細胞激素, (IL-4 、IL-5 、IL-6, IL-10) 亦被發現在被傳染動物的肺部。一些證據表明,
防護免疫是由像Th1反應被傳達。在流行性感冒傳染, CD8 細胞毒素的T 淋巴細胞(CTL)
從HA 或內部蛋白質M 、NP, 或被展示在MHC 組 I 分子的PB2識別病毒抗體辨識的區域
(Treanor 2005) 。根據它們的抗原特異性, CTLs 也許是亞群 特異性的或,
如果它們識別內部抗原, 能寬廣交叉地與流行性感冒A反應。動物實驗使用採納式CTLs調動顯露了它們在傳染期間的增生和遷移樣式(Lawrence
& Braciale 2004, Lawrence 2005) 並其,從流行性感冒傳染達到痊癒的潛力。然而,
他們在流行性感冒的控制中不是絕對地需要。
在人類T淋巴細胞反應達最高點大約在後傳染的第14天 並且流行性感冒特異性CTLs
的水平與成人病毒複製的期間和水平的減少有互相關聯。記憶CD8 T 細胞也可在改善疾病嚴重性和促進再感染時的復元充當一個角色。最近動物研究建議,
在肺裡的召回反應(recall response) 分為幾個短暫和在解剖學上被分離的分明階段。第一階段由駐在肺氣管的記憶T
細胞傳達(Woodland & Randall 2004)。重要地, 當病毒量還是非常低時,
這些細胞能對傳染的第一徵兆有反應 。由於受氣管環境限制無法對傳染而增生, 它們也許能產生細胞激素以限制病毒複製和在上皮傳播的。第二階段反應,
在最初數天的反應是由迅速地被徵入到氣管的記憶T細胞所傳達。第三階段是發生在次淋巴腺器官記憶T細胞抗原驅使的擴展。這些記憶細胞以幾天在淋巴腺器官增生和只能在受傳染的大約5
天後, 被徵入到氣管裏。(Woodland & Randall 2004)。這些從動物實驗引起的複雜模型是否適用於人類的情況是不明的。
然而, 為了改進未來疫苗的計策, 必需更好地瞭解免疫反應的類型及於流行性感冒傳染期間有效的記憶,
T細胞反應的生產及維護。
結論
我們看見了流行性感冒病毒傳染怎麼導致熱性呼吸病症的急性發展。發病原理以在肺內的病毒迅速複製和散佈為特徵,
造成局部和系統性發炎及細胞激素釋放。這些事件, 與獲得性免疫反應, 幫助減少病毒負擔,
消滅病毒, 和觸發疾病復元。體液及細胞性免疫反應, 由傳染或接種誘導, 提供個體及大眾對相關病毒品種的持久性免疫防護。然而,
流行性感冒可通過抗原轉移和漂移, 破壞這傳染或疫苗衍生的免疫, 造成流行性和大流行性爆發。技術改善,
包括基因和功能研究, 將幫助進一步了解歷史性和當前流通的流行性感冒劇毒品種的發病原理。希望這些關於人類肺部病毒免疫防禦機制的知識和高度理解,
將促進選擇更好的治療和對今後流行性感冒病毒的變異, 有更多有效的疫苗並可迅速地發展及分佈全世界。
|
|
資料
- Abramson JS, Wheeler JG,
Parce JW, et al. Suppression of endocytosis
in neutrophils by influenza A virus in vitro.
J Infect Dis 1986; 154: 456-63. Abstract:
http://amedeo.com/lit.php?id=3734493
- Achdout H, Arnon TI, Markel
G, et al. Enhanced recognition of human
NK receptors after influenza virus infection.
J Immunol 2003; 171: 915-23. Abstract: http://amedeo.com/lit.php?id=12847262
- Ahmed R, Gray D. Immunological
memory and protective immunity: understanding
their relation. Science 1996; 272: 54-60.
Abstract: http://amedeo.com/lit.php?id=8600537
- Akira S, Takeda K. Toll-like
receptor signalling. Nat Rev Immunol 2004;
4: 499-511. http://amedeo.com/lit.php?id=15229469
- Alford RH, Kasel JA, Gerone
PJ, Knight V. Human influenza resulting
from aerosol inhalation. Proc Soc Exp Biol
Med 1966; 122: 800-4. http://amedeo.com/lit.php?id=5918954
- Apisarnthanarak A, Kitphati
R, Thongphubeth K, et al. Atypical avian
influenza (H5N1). Emerg Infect Dis 2004;
10: 1321-4. Abstract: http://amedeo.com/lit.php?id=15324560
- Baigent SJ, McCauley JW.
Influenza type A in humans, mammals and
birds: determinants of virus virulence,
host-range and interspecies transmission.
Bioessays 2003; 25: 657-71. Abstract: http://amedeo.com/lit.php?id=12815721
- Beigel JH, Farrar J, Han
AM, et al. Avian influenza A (H5N1) infection
in humans. N Engl J Med 2005; 353: 1374-85.
http://amedeo.com/lit.php?id=16192482
- Belz GT, Smith CM, Kleinert
L, et al. Distinct migrating and nonmigrating
dendritic cell populations are involved
in MHC class I-restricted antigen presentation
after lung infection with virus. Proc Natl
Acad Sci U S A 2004; 101: 8670-5. Abstract:
http://amedeo.com/lit.php?id=15163797
- Bridges CB, Kuehnert MJ,
Hall CB. Transmission of influenza: implications
for control in health care settings. Clin
Infect Dis 2003; 37: 1094-101. Abstract:
http://amedeo.com/lit.php?id=14523774
- Brydon EW, Morris SJ, Sweet
C. Role of apoptosis and cytokines in influenza
virus morbidity. FEMS Microbiol Rev 2005;
29: 837-50. Abstract: http://amedeo.com/lit.php?id=16102605
- Buxton Bridges C, Katz JM,
Seto WH. Risk of influenza A (H5N1) infection
among health care workers exposed to patients
with influenza A (H5N1), Hong Kong. J Infect
Dis 2000; 181: 344-8. Abstract: http://amedeo.com/lit.php?id=10608786
- Cassidy LF, Lyles DS, Abramson
JS. Synthesis of viral proteins in polymorphonuclear
leukocytes infected with influenza A virus.
J Clin Microbiol 1988; 26: 1267-70. Abstract:
http://amedeo.com/lit.php?id=3045149
- Chan MC, Cheung CY, Chui
WH, et al. Proinflammatory cytokine responses
induced by influenza A (H5N1) viruses in
primary human alveolar and bronchial epithelial
cells. Respir Res 2005; 6: 135. Abstract:
http://amedeo.com/lit.php?id=16283933
- Chen W, Calvo PA, Malide
D, et al. A novel influenza A virus mitochondrial
protein that induces cell death. Nat Med
2001; 7: 1306-12. Abstract: http://amedeo.com/lit.php?id=11726970
- Cheung CY, Poon LL, Lau
AS, et al. Induction of proinflammatory
cytokines in human macrophages by influenza
A (H5N1) viruses: a mechanism for the unusual
severity of human disease? Lancet 2002;
360: 1831-7. Abstract: http://amedeo.com/lit.php?id=12480361
- Chotpitayasunondh T, Ungchusak
K, Hanshaoworakul W, et al. Human disease
from influenza A (H5N1), Thailand, 2004.
Emerg Infect Dis 2005; 11: 201-9. Abstract:
http://amedeo.com/lit.php?id=15752436
- Cox NJ, Kawaoka Y. Orthomyxoviruses:
Influenza. In: Topley & Wilson's Microbiology
and Microbial Infections, 9th ed., Collier
L, Balows A., Sussman M., eds., Edward Arnold,
London Vol.1, 1997: 385-433.
- Daniels RS, Douglas AR, Skehel
JJ, et al. Antigenic analyses of influenza
virus haemagglutinins with different receptor-binding
specificities. Virology 1984; 138: 174-7.
Abstract: http://amedeo.com/lit.php?id=6208680
- de Bree GJ, van Leeuwen EM,
Out TA, Jansen HM, Jonkers RE, van Lier
RA. Selective accumulation of differentiated
CD8+ T cells specific for respiratory viruses
in the human lung. J Exp Med 2005; 202:
1433-42. Abstract: http://amedeo.com/lit.php?id=16301748
- Flint SJ, Enquist LW, Racaniello
VR, Skalka AM. Principles of virology. Molecular
biology, pathogenesis, and control of animal
viruses. 2nd Edition, ASM Press,
Washington, DC, USA, 2004
- Gamblin SJ, Haire LF, Russell
RJ, et al. The structure and receptor binding
properties of the 1918 influenza hemagglutinin.
Science 2004; 303: 1838-42. Epub 2004 Feb
5. Abstract: http://amedeo.com/lit.php?id=14764886
- Garcia-Sastre A, Egorov A,
Matassov D, et al. Influenza A virus lacking
the NS1 gene replicates in interferon-deficient
systems. Virology 1998; 252: 324-30. Abstract:
http://amedeo.com/lit.php?id=9878611
- Garcia-Sastre A. Antiviral
response in pandemic influenza viruses.
Emerg Infect Dis 2006 (in press).
- Goto H, Kawaoka Y. A novel
mechanism for the acquisition of virulence
by a human influenza A virus. Proc Natl
Acad Sci U S A 1998; 95: 10224-8. Abstract:
http://amedeo.com/lit.php?id=9707628
- Guillot L, Le Goffic R,
Bloch S, et al. Involvement of toll-like
receptor 3 in the immune response of lung
epithelial cells to double-stranded RNA
and influenza A virus. J Biol Chem 2005;
280: 5571-80. Epub 2004 Dec 3. Abstract:
http://amedeo.com/lit.php?id=15579900
- Hall WJ, Douglas RG Jr,
Hyde RW, Roth FK, Cross AS, Speers DM. Pulmonary
mechanics after uncomplicated influenza
A infection. Am Rev Respir Dis 1976; 113:
141-8. Abstract: http://amedeo.com/lit.php?id=1247227
- Hayden FG, Fritz R, Lobo
MC, Alvord W, Strober W, Straus SE. Local
and systemic cytokine responses during experimental
human influenza A virus infection. Relation
to symptom formation and host defense. J
Clin Invest 1998; 101: 643-9. Abstract:
http://amedeo.com/lit.php?id=9449698
- Heath WR, Belz GT, Behrens
GM, et al. Cross-presentation, dendritic
cell subsets, and the generation of immunity
to cellular antigens. Immunol Rev 2004;
199: 9-26. Abstract: http://amedeo.com/lit.php?id=15233723
- Hemmes JH, Winkler KC, Kool
SM. Virus survival as a seasonal factor
in influenza and polimyelitis. Nature 1960;
188: 430-1. http://amedeo.com/lit.php?id=13713229
- Horner GJ, Gray FD Jr. Effect
of uncomplicated, presumptive influenza
on the diffusing capacity of the lung. Am
Rev Respir Dis 1973; 108: 866-9. http://amedeo.com/lit.php?id=4741881
- Hulse DJ, Webster RG, Russell
RJ, Perez DR. Molecular determinants within
the surface proteins involved in the pathogenicity
of H5N1 influenza viruses in chickens. J
Virol 2004; 78: 9954-64. Abstract: http://amedeo.com/lit.php?id=15331729
- Ishikawa E, Nakazawa M, Yoshinari
M, Minami M. Role of tumor necrosis factor-related
apoptosis-inducing ligand in immune response
to influenza virus infection in mice. J
Virol 2005; 79: 7658-63. Abstract: http://amedeo.com/lit.php?id=15919918
- Johansson BE, Bucher DJ,
Kilbourne ED. Purified influenza virus hemagglutinin
and neuraminidase are equivalent in stimulation
of antibody response but induce contrasting
types of immunity to infection. J Virol
1989; 63: 1239-46. Abstract: http://amedeo.com/lit.php?id=2915381
- Katz JM, Lim W, Bridges CB,
et al. Antibody response in individuals
infected with avian influenza A (H5N1) viruses
and detection of anti-H5 antibody among
household and social contacts. J Infect
Dis 1999; 180: 1763-70. http://amedeo.com/lit.php?id=10558929
- Katze MG, DeCorato D, Krug
RM. Cellular mRNA translation is blocked
at both initiation and elongation after
infection by influenza virus or adenovirus.
J Virol 1986; 60: 1027-39. Abstract: http://amedeo.com/lit.php?id=3023655
- Kondo S, Abe K. The effects
of influenza virus infection on FEV1 in
asthmatic children. The time-course study.
Chest 1991; 100: 1235-8. Abstract: http://amedeo.com/lit.php?id=1935277
- Lawrence CW, Braciale TJ.
Activation, differentiation, and migration
of naive virus-specific CD8+ T cells during
pulmonary influenza virus infection. J Immunol
2004; 173: 1209-18. Abstract: http://amedeo.com/lit.php?id=15240712
- Lawrence CW, Ream RM, Braciale
TJ. Frequency, specificity, and sites of
expansion of CD8+ T cells during primary
pulmonary influenza virus infection. J Immunol
2005; 174: 5332-40. Abstract: http://amedeo.com/lit.php?id=15843530
- Legge KL, Braciale TJ. Accelerated
migration of respiratory dendritic cells
to the regional lymph nodes is limited to
the early phase of pulmonary infection.
Immunity 2003; 18: 265-77. Abstract: http://amedeo.com/lit.php?id=12594953
- Levandowski RA, Gerrity
TR, Garrard CS. Modifications of lung clearance
mechanisms by acute influenza A infection.
J Lab Clin Med 1985; 106: 428-32. Abstract:
http://amedeo.com/lit.php?id=4045299
- Lipatov AS, Andreansky S,
Webby RJ, et al. Pathogenesis of Hong Kong
H5N1 influenza virus NS gene reassortants
in mice: the role of cytokines and B- and
T-cell responses. J Gen Virol 2005; 86:
1121-30. Abstract: http://amedeo.com/lit.php?id=15784906
- Little JW, Douglas RG Jr,
Hall WJ, Roth FK. Attenuated influenza produced
by experimental intranasal inoculation.
J Med Virol 1979; 3: 177-88. Abstract: http://amedeo.com/lit.php?id=479857
- Little JW, Hall WJ, Douglas
RG Jr, Mudholkar GS, Speers DM, Patel K.
Airway hyperreactivity and peripheral airway
dysfunction in influenza A infection. Am
Rev Respir Dis 1978; 118: 295-303. Abstract:
http://amedeo.com/lit.php?id=358877
- Mandelboim O, Lieberman
N, Lev M, et al. Recognition of haemagglutinins
on virus-infected cells by NKp46 activates
lysis by human NK cells. Nature 2001; 409:
1055-60. Abstract: http://amedeo.com/lit.php?id=11234016
- Matrosovich M, Tuzikov A,
Bovin N, et al. Early alterations of the
receptor-binding properties of H1, H2, and
H3 avian influenza virus hemagglutinins
after their introduction into mammals. J
Virol 2000; 74: 8502-12. Abstract: http://amedeo.com/lit.php?id=10954551
- Matrosovich MN, Matrosovich
TY, Gray T, Roberts NA, Klenk HD. Human
and avian influenza viruses target different
cell types in cultures of human airway epithelium.
Proc Natl Acad Sci U S A 2004; 101: 4620-4.
Abstract: http://amedeo.com/lit.php?id=15070767
- McCullers JA, Rehg JE. Lethal
synergism between influenza virus and Streptococcus
pneumoniae: characterization of a mouse
model and the role of platelet-activating
factor receptor. J Inf Dis 2002; 186: 341-50.
Abstract: http://amedeo.com/lit.php?id=12134230
- Mori I, Komatsu T, Takeuchi
K, Nakakuki K, Sudo M, Kimura Y. In vivo
induction of apoptosis by influenza virus.
J Gen Virol 1995; 76: 2869-73. Abstract:
http://amedeo.com/lit.php?id=7595397
- Olofsson S, Kumlin U, Dimock
K, Arnberg N. Avian influenza and sialic
acid receptors: more than meets the eye?
Lancet Infect Dis 2005; 5: 184-8. Abstract:
http://amedeo.com/lit.php?id=15766653
- Palladino G, Mozdzanowska
K, Washko G, Gerhard W. Virus-neutralizing
antibodies of immunoglobulin G (IgG) but
not of IgM or IgA isotypes can cure influenza
virus pneumonia in SCID mice. J Virol 1995;
69: 2075-81. Abstract: http://amedeo.com/lit.php?id=7884853
- Park CH, Ishinaka M, Takada
A, The invasion routes of neurovirulent
A/Hong Kong/483/97 (H5N1) influenza virus
into the central nervous system after respiratory
infection in mice. Arch Virol 2002; 147:
1425-36. Abstract: http://amedeo.com/lit.php?id=12111416
- Peiris JS, Yu WC, Leung
CW, et al. Re-emergence of fatal human influenza
A subtype H5N1 disease. Lancet 2004; 363:
617-9. http://amedeo.com/lit.php?id=14987888
- Piqueras B, Connolly J, Freitas
H, Palucka AK, Banchereau J. Upon viral
exposure myeloid and plasmacytoid dendritic
cells produce three waves of distinct chemokines
to recruit immune effectors. Blood 2005;
Abstract: http://amedeo.com/lit.php?id=16317096
- Renegar KB, Small PA Jr,
Boykins LG, Wright PF. Role of IgA versus
IgG in the control of influenza viral infection
in the murine respiratory tract. J Immunol
2004; 173: 1978-86. Abstract: http://amedeo.com/lit.php?id=15265932
- Sanz-Ezquerro JJ, Zurcher
T, de la Luna S, Ortin J, Nieto A. The amino-terminal
one-third of the influenza virus PA protein
is responsible for the induction of proteolysis.
J Virol 1996; 70: 1905-11. Abstract: http://amedeo.com/lit.php?id=8627716
- Schmitz N, Kurrer M, Bachmann
MF, Kopf M. Interleukin-1 is responsible
for acute lung immunopathology but increases
survival of respiratory influenza virus
infection. J Virol 2005; 79: 6441-8. Abstract:
http://amedeo.com/lit.php?id=15858027
- Shortman K, Liu YJ. Mouse
and human dendritic cell subtypes. Nat Rev
Immunol 2002; 2: 151-61. Abstract: http://amedeo.com/lit.php?id=11913066
- Silver ML, Guo HC, Strominger
JL, Wiley DC. Atomic structure of a human
MHC molecule presenting an influenza virus
peptide. Nature 1992; 360: 367-9. Abstract:
http://amedeo.com/lit.php?id=1448154
- Taubenberger JK. Influenza
virus hemagglutinin cleavage into HA1, HA2:
no laughing matter. Proc Natl Acad Sci U
S A 1998; 95: 9713-5. http://amedeo.com/lit.php?id=9707539
- To KF, Chan PK, Chan KF,
et al. Pathology of fatal human infection
associated with avian influenza A H5N1 virus.
J Med Virol 2001; 63: 242-6. Abstract: http://amedeo.com/lit.php?id=11170064
- Tran TH, Nguyen TL, Nguyen
TD, et al. Avian influenza A (H5N1) in 10
patients in Vietnam. N Engl J Med 2004;
350: 1179-88. http://amedeo.com/lit.php?id=14985470
- Treanor JJ. Influenza virus.
In: Mandell GL, Bennett JE, Dolin R, eds.
Mandell, Douglas, and Bennett's Principles
and Practice of Infectious Diseases. 6th
ed. Churchill Livingstone; 2004: 2060-2085.
- Tsitoura DC, Kim S, Dabbagh
K, Berry G, Lewis DB, Umetsu DT. Respiratory
infection with influenza A virus interferes
with the induction of tolerance to aeroallergens.
J Immunol 2000; 165: 3484-91. Abstract:
http://amedeo.com/lit.php?id=10975869
- Tumpey TM, Basler CF, Aguilar
PV, et al. Characterization of the reconstructed
1918 Spanish influenza pandemic virus. Science
2005; 310: 77-80. Abstract: http://amedeo.com/lit.php?id=16210530
- Uiprasertkul M, Puthavathana
P, Sangsiriwut K, et al. Influenza A H5N1
replication sites in humans. Emerg Infect
Dis 2005; 11: 1036-41. Abstract: http://amedeo.com/lit.php?id=16022777
- Ungchusak K, Auewarakul
P, Dowell SF, et al. Probable person-to-person
transmission of avian influenza A (H5N1).
N Engl J Med 2005; 352: 333-40. Abstract:
http://amedeo.com/lit.php?id=15668219
- Utell MJ, Aquilina AT, Hall
WJ, et al. Development of airway reactivity
to nitrates in subjects with influenza.
Am Rev Respir Dis 1980; 121: 233-41. http://amedeo.com/lit.php?id=7362132
- Weis W, Brown JH, Cusack
S, Paulson JC, Skehel JJ, Wiley DC. Structure
of the influenza virus haemagglutinin complexed
with its receptor, sialic acid. Nature 1988;
333: 426-31. Abstract: http://amedeo.com/lit.php?id=3374584
- Wiley JA, Cerwenka A, Harkema
JR, Dutton RW, Harmsen AG. Production of
interferon-gamma by influenza hemagglutinin-specific
CD8 effector T cells influences the development
of pulmonary immunopathology. Am J Pathol
2001a; 158: 119-30. Abstract: http://amedeo.com/lit.php?id=11141485
- Wiley JA, Hogan RJ, Woodland
DL, Harmsen AG. Antigen-specific CD8(+)
T cells persist in the upper respiratory
tract following influenza virus infection.
J Immunol 2001b; 167: 3293-9. Abstract:
http://amedeo.com/lit.php?id=11544317
- Wiley JA, Tighe MP, Harmsen
AG. Upper respiratory tract resistance to
influenza infection is not prevented by
the absence of either nasal-associated lymphoid
tissue or cervical lymph nodes. J Immunol
2005; 175: 3186-96. Abstract: http://amedeo.com/lit.php?id=16116209
- Wilson NS, Behrens GMN,
Lundie RJ, Systemic activation of dendritic
cells by TLR ligands or malaria infection
impairs cross cross-priming and anti-viral
immunity. Nat Immunol 2006 (in press)
- Woodland DL. Cell-mediated
immunity to respiratory virus infections.
Curr Opin Immunol 2003; 15: 430-5. Abstract:
http://amedeo.com/lit.php?id=12900275
- Woodland DL, Randall TD.
Anatomical features of anti-viral immunity
in the respiratory tract. Semin Immunol
2004; 16: 163-70. Abstract: http://amedeo.com/lit.php?id=15130500
- Woodland DL, Scott I. T
cell memory in the lung airways. Proc Am
Thorac Soc 2005; 2: 126-31. Abstract: http://amedeo.com/lit.php?id=16113480
- Yeldandi AV, Colby TV. Pathologic
features of lung biopsy specimens from influenza
pneumonia cases. Hum Pathol 1994; 25: 47-53.
Abstract: http://amedeo.com/lit.php?id=8314260
- Yen HL, Herlocher LM, Hoffmann
E, et al. Neuraminidase inhibitor-resistant
influenza viruses may differ substantially
in fitness and transmissibility. Antimicrob
Agents Chemother 2005; 49: 4075-84. Abstract:
http://amedeo.com/lit.php?id=16189083
- Yuen KY, Chan PK, Peiris
M, et al. Clinical features and rapid viral
diagnosis of human disease associated with
avian influenza A H5N1 virus. Lancet 1998;
351: 467-71. http://amedeo.com/lit.php?id=9482437
- Yuen KY, Wong SS. Human infection
by avian influenza A H5N1. Hong Kong Med
J 2005; 11: 189-99. Abstract: http://amedeo.com/lit.php?id=15951584
|
|
|
|
|